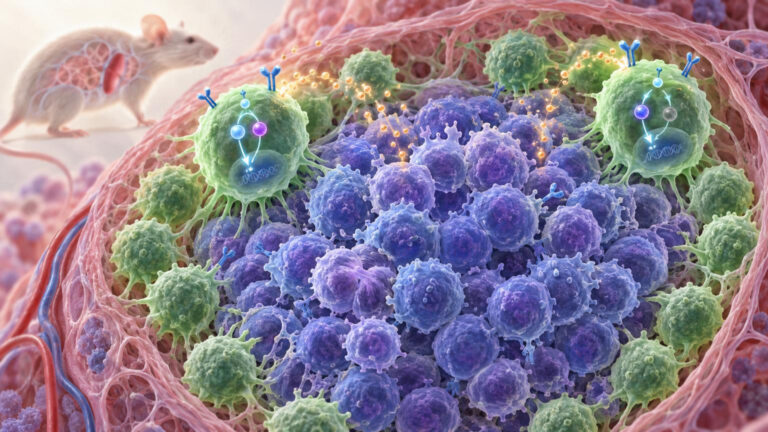

Ilustraciones editoriales generadas con IA; no son imágenes documentales del hallazgo.
Ficha de expediente
El estudio midió cómo C. elegans responde al 1-octanol y encontró que este olor no se comporta como una señal aversiva única: activa rutas olfativas de atracción y de repulsión. La decisión observable —acercarse, detenerse, retroceder o evitar— dependería del peso relativo de esas señales opuestas dentro de un sistema nervioso diminuto.
La importancia del resultado está en el mecanismo. En lugar de una línea simple del tipo “olor malo igual a huida”, el trabajo publicado en eLife propone una lectura de riesgo-beneficio: el mismo compuesto químico puede empujar al animal en direcciones contrarias, y el circuito resuelve el conflicto modulando velocidad, reversas locomotoras e interneuronas de comando.
Un olor que no encaja en la etiqueta de “repelente simple”
El estudio afirma que el olor 1-octanol se codifica en la periferia como una combinación de señales de atracción y repulsión, no como una sola señal aversiva simple. Esa es la pieza que cambia la interpretación clásica del caso: el 1-octanol había sido tratado principalmente como un estímulo repelente para C. elegans, pero los registros neuronales mostraron una mezcla más rica.
En términos prácticos, el gusano no “sabe” que una molécula es buena o mala en abstracto. Sus neuronas sensoriales responden con patrones distintos, y esos patrones entran en una red que transforma la química externa en movimiento. Como analogía explicativa —no como una medición literal—, el circuito funciona menos como un interruptor y más como una votación ponderada: algunas señales empujan hacia la retirada y otras hacia la exploración.
La interpretación central del artículo es que las señales opuestas se integran en circuitos centrales y que su fuerza relativa determina sensibilidad, valencia y rasgos locomotores de la respuesta. Por eso el resultado interesa más allá de un olor concreto: muestra cómo un sistema nervioso de pocas neuronas puede combinar información contradictoria sin necesitar un cerebro complejo.
La arena microfluídica puso a prueba la conducta
Para observar la respuesta, los autores usaron ensayos conductuales en una arena microfluídica de dos cámaras. En el ensayo conductual, los gusanos fueron repelidos por 1-octanol en S-basal a 2,2 mM dentro de una arena microfluídica de dos cámaras; esa cifra corresponde a la concentración de la solución usada en el experimento. No debe leerse como una concentración ambiental general, sino como una condición experimental definida.
Este tipo de dispositivo permite presentar sustancias químicas con control espacial y temporal, algo crucial cuando se quiere relacionar una señal con un cambio de trayectoria. Un trabajo metodológico independiente en Nature Methods respalda el uso de microfluidos para exponer C. elegans a estímulos químicos definidos en líquido, con patrones controlados. Ese respaldo es metodológico: no confirma por sí mismo los resultados específicos sobre 1-octanol.
La ventaja del enfoque es que el comportamiento deja de ser una observación vaga de “se aleja” o “se acerca”. Puede descomponerse en variables más concretas: cuánto cambia la velocidad, cuándo aparecen reversas y cómo se reorganiza la trayectoria cuando el animal encuentra el estímulo.
NeuroPAL permitió seguir muchas neuronas identificadas
El trabajo usó imagen de calcio a escala de red completa en C. elegans para estudiar cómo se codifican los olores. La imagen de calcio no registra pensamientos ni decisiones internas en sentido humano; mide cambios de actividad neuronal asociados a señales de calcio, que sirven como indicador de cuándo una neurona está respondiendo.
Para identificar neuronas durante los registros, los autores emplearon NeuroPAL, que permite imagen de calcio de cerebro completo con identificación neuronal no ambigua. En un animal tan pequeño, esa identificación importa: no basta con ver que “algo” se activa; hay que saber qué neurona o clase neuronal participa en la respuesta.
El estudio reportó respuestas sensoriales aversivas esperadas: ASH y BAG respondieron al inicio del estímulo, AWB también respondió al inicio y ADL se desensibilizó tras la primera aplicación. Ese patrón encaja con la parte defensiva de la respuesta al 1-octanol: neuronas asociadas a señales nocivas o aversivas se activan cuando aparece el estímulo.
La sorpresa estuvo en AWC, una vía asociada a atracción
Un resultado clave fue que las neuronas AWC, típicamente asociadas a atracción, también respondieron al 1-octanol con un patrón opuesto al de ASH. Según el estudio, la actividad de AWC disminuía al añadir 1-octanol y rebotaba cuando el estímulo se retiraba, un patrón compatible con su papel en respuestas de atracción a olores.
Los autores presentan ese hallazgo como sorprendente porque AWC suele considerarse una neurona atractiva y porque el 1-octanol se había descrito hasta entonces como repelente para C. elegans. La clave no es que el olor deje de ser repelente en las condiciones ensayadas, sino que la repulsión observable puede coexistir con una señal atractiva simultánea.
Esto ayuda a entender la idea de riesgo-beneficio en un organismo simple. Si una señal atractiva y otra aversiva llegan al circuito a la vez, la conducta final puede variar según su intensidad relativa. Un cambio en concentración, estado del animal o sensibilidad de una vía podría desplazar el resultado hacia exploración o evitación, aunque el compuesto sea el mismo.
Del sensor al movimiento: velocidad, reversas y comandos
La propuesta del artículo conecta la codificación olfativa con el programa motor. Las rutas aversivas no solo indicarían “evita”, sino que contribuirían a cambios de velocidad y a reversas locomotoras; las rutas atractivas aportarían una presión opuesta. El balance entre ambas terminaría influyendo en las interneuronas de comando que organizan la salida motora.
Ese punto es importante porque una decisión conductual no aparece de golpe al final del circuito. Se construye en capas: primero la detección periférica, luego la integración central y finalmente la ejecución motora. En C. elegans, esa cadena puede estudiarse con una resolución inusual porque su sistema nervioso es pequeño y sus neuronas pueden identificarse con precisión.
La lectura más útil del estudio, por tanto, no es que el gusano “piense” como un animal complejo. Es que incluso una red nerviosa mínima puede resolver conflictos entre señales de signo contrario y convertirlos en una conducta flexible.
Una cautela: registrar neuronas no siempre equivale a ver al animal libre
Una limitación experimental importante es que los registros confocales requirieron inmovilización y anestesia, condiciones que distorsionan ciertos aspectos de las secuencias motoras frente a animales moviéndose libremente. Esto no invalida el hallazgo neuronal, pero sí obliga a separar dos niveles de evidencia: la conducta en arenas microfluídicas y la actividad neuronal registrada bajo condiciones de microscopía.
La cautela es especialmente relevante cuando se habla de programas motores. Un animal inmovilizado no ejecuta de la misma manera una reversa, no recibe la misma retroalimentación propioceptiva y no explora el entorno como uno que se desplaza libremente. Por eso la fuerza del estudio está en combinar métodos, no en convertir un único registro en explicación completa.
La consecuencia concreta es clara: el 1-octanol en C. elegans ya no se entiende bien como un simple botón de huida. El trabajo lo presenta como un estímulo con doble valencia, útil para estudiar cómo una red pequeña pondera señales opuestas y decide, en términos conductuales, si el riesgo pesa más que la recompensa.